
一株“吃废油、吐黄金”的非模式酵母,如何成为合成生物学的明星底盘
前沿简介
你或许听说过酿酒酵母——那是做面包和啤酒的老朋友。但在合成生物学的舞台上,另一位“非主流”选手正在悄然崛起,它就是解脂耶氏酵母(Yarrowia lipolytica)。
这种酵母不走寻常路:它天生爱“吃油”,能在pH低至3.0的酸性环境中茁壮生长,能耐受高盐、低温,甚至能把细胞干重的30%–70%都塞满油脂。更厉害的是,它被美国FDA认定为GRAS(一般认为安全)级别微生物,可以直接用于食品和饲料生产。
过去十年,解脂耶氏酵母的研究重心已从基础分子生物学全面转向代谢工程与生物技术应用。科学家在其体内成功表达了超过150种重组蛋白,并重构了数十条高价值化学品的合成途径。虾青素、赤藓糖醇、角鲨烯、α-法尼烯等产物的发酵滴度已攀升至克级乃至数十克每升的水平,美国杜邦公司更是率先将其用于深海鱼油核心成分EPA的产业化制造。
从实验室的“潜力菌株”到发酵罐里的“超级工厂”,解脂耶氏酵母正在证明:当基因编辑工具、合成生物学元件和系统生物学模型形成合力时,一个曾被忽视的非模式酵母,完全有能力重新定义绿色生物制造的边界。
一、解脂耶氏酵母的五大特性
在合成生物学的“底盘选角”中,大肠杆菌和酿酒酵母长期占据C位。但解脂耶氏酵母凭什么后来居上?答案藏在它的五个独特天赋里。
特性一:天然产油,前体充足。作为一种产油酵母,解脂耶氏酵母天然菌株的油脂积累量可达细胞干重的30%–70%,经代谢工程改造后甚至能突破90%。这意味着它体内拥有一个巨大的乙酰辅酶A“原料库”——乙酰辅酶A是合成萜类、黄酮、脂肪酸等高价值产物的核心前体。相比酿酒酵母,解脂耶氏酵母的乙酰辅酶A供给通量高出数倍,这为高价值产物的高效合成提供了先天优势。
特性二:食谱广泛,变废为宝。解脂耶氏酵母的食谱非常广泛。除了常规的葡萄糖,它还能利用废弃食用油、工业副产物甘油、甘蔗糖蜜、木质纤维素水解液、木薯皮、鱼头废料等廉价底物。这得益于它强大的过氧化物酶体β-氧化系统和丰富的脂肪酶分泌能力。它就像一位能将“厨余垃圾”变成“美味大餐”的神奇厨师,极大地降低了生产成本。
特性三:抗逆性强,皮实耐造。低pH?不怕。高盐?能扛。低温?可以。有机溶剂?照样活。解脂耶氏酵母是一种Crabtree阴性酵母——即使在有氧条件下也不产生乙醇,这意味着它在高密度发酵中不会因乙醇积累而自抑制。这种极端环境耐受性让它特别适合工业规模的粗放发酵。
特性四:安全合规,应用无碍。解脂耶氏酵母获得了美国FDA的GRAS(一般认为安全)认证,这意味着它的产物可以直接进入食品和饲料供应链,这是大多数工程菌(如大肠杆菌)梦寐以求的“通行证”。
特性五:基因组独特,易于改造。解脂耶氏酵母的GC含量高达49.6%–51.7%(酿酒酵母仅38%),约15%的基因含有内含子(酿酒酵母仅5%)。这种独特的基因组结构使其具有更复杂的RNA剪接机制。更重要的是,内含子可以增强基因表达——TEF1启动子中嵌入内含子后,表达量提升了17倍;FBA1启动子加了内含子后也增强了5倍,这为基因工程的精准调控提供了独特优势。
9月19日-20日线上培训班生物药发酵工艺开发与过程控制优化及中试到产业化的放大策略专题研讨班
公众号:微生物发酵9月19日-20日线上培训班生物药发酵工艺开发与过程控制优化及中试到产业化的放大策略专题研讨班
二、四大代谢途径与高附加值产品
解脂耶氏酵母之所以能成为“细胞工厂”的明星底盘,核心在于它拥有一条高效的乙酰辅酶A生产线——在氮源限制条件下,线粒体内积累的柠檬酸被转运至细胞质,经ATP-柠檬酸裂解酶裂解,源源不断地产生乙酰辅酶A。这个核心前体通过四条不同的代谢途径,分流进入各类高价值产物的合成。
2.1 TCA循环途径——有机酸的“高产流水线”
解脂耶氏酵母天生就会大量分泌多种TCA循环中间体有机酸。通过代谢工程,这些酸的产量已被推到令人瞩目的高度:
|
|
|
|
|---|---|---|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
衣康酸的突破尤为亮眼。美国能源部将衣康酸列为12种最具潜力的生物质衍生化学品之一。从最初仅4.6 g/L,到通过模块化策略推至130.1 g/L,关键改造包括:阻断TAG和甾醇酯合成(删除DGA1/DGA2/LRO1/ARE1)、阻断α-KG和乙醛酸积累(删除IDP和ICL1)、强化衣康酸合成(过表达MTT、MDT、CAD)。这是迄今为止酵母代谢工程达到的最高产物浓度之一。
2.2 甲羟戊酸(MVA)途径——萜类的“合成车间”
乙酰辅酶A通过内源的MVA途径生成异戊烯焦磷酸(IPP)和二甲基烯丙基焦磷酸(DMAPP),这是所有萜类的通用前体。解脂耶氏酵母的天然优势在于,它不仅能高效供应前体,还能利用脂滴储存疏水性的萜类产物,避免细胞毒性。
|
|
|
|
|---|---|---|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
角鲨烯(51 g/L):通过重构整个MVA途径(整合ERG10/13/12/8/9/IDI/ERG20等8个基因)、删除MLS1和ERG5,配合角鲨烯环氧化酶抑制剂特比萘芬,创下微生物最高纪录。
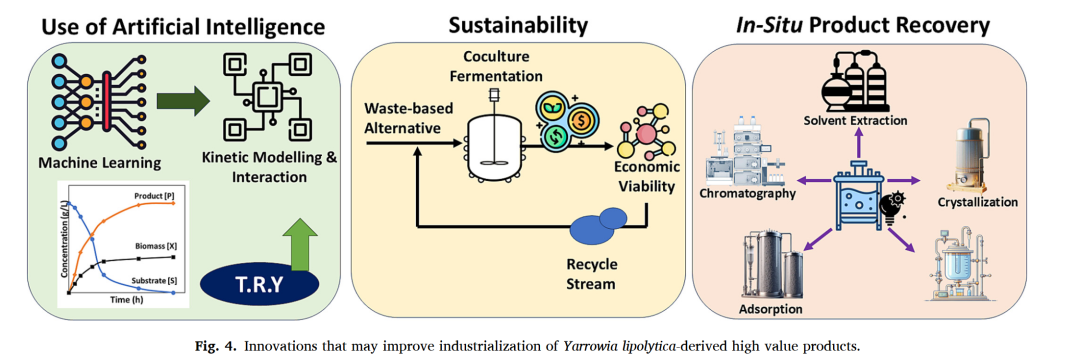
β-胡萝卜素(39.5 g/L):引入卷枝毛霉的CarB和CarRP,配合形态工程(敲除CLA4和MHY1维持酵母态)。更有趣的是,共培养策略——一株野生型将葡萄糖转化为柠檬酸,另一株工程菌以柠檬酸为唯一碳源生产β-胡萝卜素——产量达4101 mg/L,是单菌发酵的近2倍。
2.3 磷酸戊糖途径(PPP)与莽草酸途径——功能糖与芳香族产物
|
|
|
|
|---|---|---|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
赤藓糖醇(256 g/L)的系统策略堪称典范:阻断降解途径(敲除EYD1和EYK1)、强化合成途径(过表达ZWF1、GND1、TKL1、TAL1、ER10/ER25/ER27)、形态学优化(敲除CLA4和MHY1,产量增加139%)、启动子工程(筛选最强启动子SUAS1B×8-PTEFin),最后在22,500L工业发酵罐中验证了196 g/L的产量,证明其工业化可行性。
白藜芦醇从最初的mg/L级别,通过莽草酸途径代谢流增强、多拷贝随机整合+高通量筛选、精确控制酵母形态,最终达到22.5 g/L——这个数字已经足以支撑商业化生产。
2.4 脂肪酸合成途径——从大宗油脂到精准营养
作为产油酵母的“看家本领”,脂肪酸代谢工程在解脂耶氏酵母中最为成熟。
|
|
|
|
|---|---|---|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
EPA的商业化是解脂耶氏酵母最成功的产业化案例。通过Δ9延长酶途径和PEX10删除策略,EPA含量超细胞干重15%,杜邦公司已实现工业化生产。
神经酸:通过表达植物来源的β-酮脂酰辅酶A合酶(KCS)和延长酶(ELOVL6)、过表达MoDGAT2和MoGPAT1、删除SNF1,产量达17.3 g/L。
三、应用领域
3.1 医药健康领域
解脂耶氏酵母凭借其GRAS安全身份和高效的代谢通路,在医药健康领域已产出一系列高价值产品。
多不饱和脂肪酸(EPA/DHA):EPA(二十碳五烯酸)和DHA(二十二碳六烯酸)属于ω-3不饱和脂肪酸家族,是人体无法自行合成的必需脂肪酸。EPA具有降低血液中三酸甘油酯和胆固醇、预防血栓形成、抑制炎症、调节免疫等功效;DHA俗称“脑黄金”,对胎儿大脑发育、减少产后抑郁、改善老年痴呆具有重要作用。传统来源主要为深海鱼油,资源受限且存在重金属污染风险。解脂耶氏酵母通过Δ9延长酶途径和PEX10基因删除,使EPA含量超细胞干重15%,杜邦公司已实现商业化生产,成为该领域的标杆案例。
类胡萝卜素(β-胡萝卜素、番茄红素、虾青素):类胡萝卜素是一类具有红色或橙黄色的四萜类化合物,具有强抗氧化能力。β-胡萝卜素是维生素A的前体,具有抗氧化、抗癌活性,广泛应用于食品添加剂和化妆品;番茄红素具有延缓衰老、预防心血管疾病及前列腺癌等功效;虾青素是自然界最强的抗氧化剂之一,在水产养殖饲料和保健品中应用广泛。解脂耶氏酵母通过引入外源合成基因并结合形态工程,β-胡萝卜素产量达39.5 g/L,番茄红素达5.1 g/L,虾青素达3.3 g/L。
神经酸(C24:1):神经酸是一种长链单不饱和脂肪酸,对神经系统健康至关重要,能够修复受损神经纤维、促进髓鞘再生,在治疗阿尔茨海默病、多发性硬化等神经退行性疾病方面具有治疗潜力。传统来源为植物种子油,提取成本高昂。解脂耶氏酵母通过表达植物来源的β-酮脂酰辅酶A合酶和延长酶,产量达17.3 g/L(占总脂肪酸17.9%),为神经退行性疾病的营养干预提供了新的原料来源。
黄酮类化合物(柚皮素、二氢槲皮素、樱花素):黄酮类化合物是植物来源的多酚类次级代谢产物,具有广泛的药理活性。柚皮素是多种黄酮的通用前体,具有抗氧化、抗炎活性;二氢槲皮素具有抗氧化、抗癌、抗菌、抗炎等多种生理活性,全球市场需求持续增长;樱花素具有抗病毒、抗真菌、抗炎等特性,广泛应用于化妆品和医药领域。解脂耶氏酵母通过对莽草酸途径的系统改造,柚皮素产量达8.3 g/L,二氢槲皮素达4.2 g/L,樱花素达687 mg/L,均处于同类宿主的前列。
白藜芦醇:白藜芦醇(3,5,4′-三羟基-反式-二苯乙烯)是一种天然多酚类化合物,因“法国悖论”而闻名——尽管法国人饮食中高脂肪食物摄入量较高,但心血管疾病发病率却相对较低,部分归因于红酒中的白藜芦醇。它具有抗衰老、心血管保护、抗炎、抗氧化等多种生物活性,广泛用作膳食补充剂和化妆品成分,预计2028年全球市场价值将从2018年的9770万美元以每年8%的速度增长。解脂耶氏酵母从最初的mg/L级别,通过莽草酸途径代谢流增强和发酵工艺优化,产量达到22.5 g/L,已具备商业化生产的经济可行性。
天麻素:天麻素(羟基苄醇-4-O-β-D-吡喃葡萄糖苷)是一种苯酚苷类化合物,是天麻的主要活性成分,具有神经保护作用,可用于治疗头痛、眩晕、癫痫和神经退行性疾病。传统来源为名贵中药材天麻,资源稀缺。解脂耶氏酵母通过整合异源天麻素生物合成途径并过表达莽草酸途径基因,产量达13.2 g/L,是目前报道的最高微生物生产水平。
2-苯乙醇:2-苯乙醇是一种具有玫瑰花香的高价值芳香族化合物,广泛用于食品、香料和香精行业。它也是L-苯丙氨酸通过艾氏途径的代谢产物。传统方法为化学合成或从植物中提取。解脂耶氏酵母通过重构艾氏途径、引入反馈抑制不敏感的DAHP合酶和预苯酸脱水酶,同时敲除竞争分支途径,产量达2.4 g/L,L-苯丙氨酸转化率达95%,代表了酵母中从头合成的最高水平。
虫草素:虫草素(3′-脱氧腺苷)是一种核苷类化合物,天然来源于蛹虫草等真菌,具有抗炎、抗衰老、免疫调节等多种药理活性,市场价高达44万美元/公斤。解脂耶氏酵母通过过表达氧化还原酶/脱氢酶复合物、金属依赖性磷酸水解酶、葡萄糖激酶和磷酸葡萄糖变位酶等基因,优化己糖利用和碳代谢流,以甘蔗糖蜜为底物产量达2.3 g/L,展示了利用农工业废弃物生产高价值医药原料的潜力。
鞘脂类(神经酰胺、二氢鞘氨醇、四乙酰植物鞘氨醇):鞘脂是真核细胞质膜的重要组成部分,在细胞信号传导中发挥关键作用。神经酰胺具有保湿、抗炎等护肤功效,是高端护肤品中的核心活性成分;鞘氨醇碱类(二氢鞘氨醇、植物鞘氨醇)及其乙酰化衍生物在化妆品和医药领域具有重要应用价值。解脂耶氏酵母具有天然的C4-脱饱和酶基因,可合成鞘氨醇基鞘脂。通过敲除SUR2和SLD1基因阻断降解途径,并过表达小鼠来源的碱性神经酰胺酶,非乙酰化长链鞘氨醇碱产量达1.4 g/L;通过共表达威克汉姆酵母来源的乙酰转移酶Sli1p和Atf2p,四乙酰植物鞘氨醇产量达650 mg/L。
3.2 食品与饲料工业
赤藓糖醇:赤藓糖醇是一种四碳糖醇,甜度为蔗糖的60%–70%,热量仅为蔗糖的5%(0.84 kJ/g),是所有糖醇中热量最低的。它几乎不被人体代谢,约90%随尿液排出,不引起血糖升高,还具有抗龋齿作用,是糖尿病患者和减脂人群理想的零卡路里甜味剂。解脂耶氏酵母通过系统的代谢工程和形态工程,产量达256 g/L(摇瓶),在22,500L工业发酵罐中验证了196 g/L的水平,稳居全球最高水平,已具备工业化竞争力。
天然色素(β-胡萝卜素、藏红花酸):β-胡萝卜素是食品工业中最常用的天然橙色色素,同时也是维生素A的安全前体。藏红花酸是一种来源于藏红花的多功能类胡萝卜素,用于天然色素和药材成分。随着消费者对“清洁标签”和天然食品添加剂的需求增长,微生物发酵来源的天然色素正逐步替代化学合成色素。解脂耶氏酵母β-胡萝卜素产量达39.5 g/L,藏红花酸达30.17 mg/L。
单细胞蛋白(SCP):单细胞蛋白是指微生物干燥菌体,富含优质蛋白质、维生素和矿物质,可作为食品和饲料的蛋白补充剂。与传统植物蛋白相比,它具有生产周期短、不受气候和土地限制、氨基酸组成齐全等优势。解脂耶氏酵母的蛋白含量可达细胞干重的40%–64%,且富含动物和植物来源中缺乏的赖氨酸和蛋氨酸。以甘蔗糖蜜为底物,生物量可达151.2 g/L;在虾饲料中添加2.68%的解脂耶氏酵母菌体可替代10.54%的鱼粉,并显著提升虾的抗氧化能力。此外,利用燕麦麸生产的SCP蛋白含量40%–50%,可作为人类营养补充剂。
芳香化合物(γ-癸内酯):γ-癸内酯是一种具有浓郁桃子香气的内酯类芳香化合物,广泛应用于食品、饮料和化妆品香精。传统方法为化学合成或从水果中提取。解脂耶氏酵母天然能够利用蓖麻油或粗甘油合成γ-癸内酯,通过敲除特定POX基因阻断降解途径,产量可达7 g/L,展现出“天然等同”香料生产的工业潜力。此外,工程菌株还实现了乙酸异戊酯(香蕉香气)3404 mg/L的高水平生产。
类可可脂:可可脂是巧克力生产的核心原料,传统来源为可可豆,供应受气候和地缘政治影响。解脂耶氏酵母产生的油脂富含棕榈酸(C16:0)和硬脂酸(C18:0),脂肪酸饱和度可达64%–89%,与可可脂的脂肪酸组成高度相似。以羊脂为唯一碳源,3天后干细胞质量浓度达14.11 g/L,脂质含量33.1%。这为巧克力原料的可持续供应开辟了新路径。
糖类功能食品(2′-岩藻糖基乳糖、异麦芽酮糖、海藻糖):2′-岩藻糖基乳糖是人乳中含量最高的寡糖,具有调节肠道菌群、免疫调节及促进神经系统发育等多种活性,是高端婴幼儿配方奶粉的核心功能配料。通过导入异源乳糖转运蛋白和α-1,2-岩藻糖基转移酶,产量与传统大肠杆菌生产者相当。异麦芽酮糖(572.1 g/L)和海藻糖(219 g/L)也实现了高产,丰富了功能甜味剂的选择。
3.3 绿色能源与生物材料
生物柴油原料(总脂质/TAG):微生物油脂是制备生物柴油的理想原料,生产过程绿色环保,不受土地和气候限制。解脂耶氏酵母通过过表达ACC1、DGA1、GPD1并敲除β-氧化途径基因(POX1-6、MFE1、PEX10),总脂质产量达115 g/L,含量超细胞干重90%。以废弃食用油为底物,可将“废油”转化为高质量的生物柴油前体,实现能源与废弃物管理的双重收益。
生物燃料前体(α-法尼烯、柠檬烯):α-法尼烯是一种倍半萜烯,具有高能量密度和低吸湿性,可作为先进生物燃料的潜在组分。解脂耶氏酵母通过NHEJ介导的多基因迭代整合和MVA途径重构,α-法尼烯产量达25.55 g/L,是解脂耶氏酵母中报道的最高萜类产量。柠檬烯是一种单萜烯,可用作生物燃料添加剂和绿色溶剂,以废弃食用油为底物可达165.3 mg/L,展示了利用食物垃圾生产生物燃料的可行性。
工业平台化合物(衣康酸、琥珀酸):美国能源部将衣康酸和琥珀酸均列为12种最具潜力的生物质衍生化学品。衣康酸是生产涂料、增稠剂、合成纤维和超吸水性聚合物的重要单体,可替代石油基丙烯酸;琥珀酸是生产四氢呋喃、1,4-丁二醇、聚丁二酸丁二醇酯(PBS可降解塑料)和γ-丁内酯的关键前体,全球市场预计2026年超2亿美元。解脂耶氏酵母生产的衣康酸达130.1 g/L,琥珀酸达160 g/L(转化率0.79 g/g),为可降解塑料和绿色化学品的生物制造提供了有力支撑。
二羧酸(DCA):长链二羧酸是生产聚酯、聚酰胺和聚氨酯的单体,也是合成香水、热熔粘合剂和润滑剂的重要中间体。传统依赖石油原料,生产成本随碳链长度增加而上升。热带假丝酵母工程菌可产130–140 g/L的DCA;解脂耶氏酵母通过过表达P450单加氧酶和还原酶,以甘油为底物可产3.49 g/L的长链DCA,部分产品已进入中试生产。
蜡酯:蜡酯由长链脂肪酸和脂肪醇通过酯化反应形成,广泛应用于个人护理产品、润滑剂和涂料。天然来源为荷荷巴树,但产量不足、提取成本高。解脂耶氏酵母工程菌通过表达蜡酯合成酶和异源脂肪酸延长酶,产量达570 mg/L,为可再生润滑剂提供了绿色替代方案。
3.4 环境修复
解脂耶氏酵母最初就是从被石油污染的环境中分离出来的,它天生就是一把“清理好手”。它能分泌生物表面活性剂降低界面张力,将疏水性烃类乳化后“吃掉”。研究表明,不同菌株对正十六烷的降解率可达39%–78%(7天内)。短链烷烃(C9–C16)比长链烷烃(C17–C25)更容易降解,原油浓度低于2%(v/v)时不抑制生长和降解效率。降解过程为需氧过程,需充分供氧。两株海洋来源的解脂耶氏酵母(NCIM 3589和NCIM 3590)对钒、钴、铬、铜、镍、铅、锌等多种重金属具有高耐受性,通过基因工程删除MET25和YALI0F14047g基因,工程菌株可在不影响生长的前提下产生550 ppm的硫化物,对镉、铜、铅的去除率超过90%。此外,该酵母还可用于处理油脂废水,其脂肪酶能高效分解废水中的高油脂、高COD和BOD污染物,在活性污泥体系中可长期存活。
四、菌株改造与工艺优化
要打造一株“超级酵母”,既需要精准的基因工程工具,也需要高效的发酵工艺配合。
4.1 基因编辑工具箱的进化
启动子工程:研究者已构建了涵盖组成型、诱导型、合成型、光控型和阶段特异性启动子的完整“菜单”。一个关键发现是——启动子的强度并不总是与产物产量正相关。在异戊醇生产中,用弱启动子控制关键基因时,产量反而比用最强启动子提高了30.3倍,说明“恰到好处的表达”比“越强越好”更重要。
CRISPR技术的五代演进:从2016年Pol III-tRNA启动子驱动sgRNA(单基因敲除效率92%),到CRISPRi(同源重组效率提升至90%)、CRISPRa(激活内源基因BGL1/BGL2,表达量分别提升112倍和43倍)、CRISPR/Cpf1(降低脱靶率),再到Target-AID碱基编辑(无需供体DNA,单基因效率94%),解脂耶氏酵母的基因编辑精度和效率实现了质的飞跃。
4.2 适应性实验室进化(ALE)
当理性设计遇到瓶颈时,ALE提供了一条“以时间换进化”的路径。通过让菌株在逐渐增加的压力下连续传代,可以筛选出具有优良性状的突变体。
-
柠檬烯耐受性:通过ALE筛选,过表达YALI0F19492p使产量提升8倍 -
脂质高产:通过EMS诱变结合“漂浮选择法”,获得油脂产量39.1 g/L的进化菌株 -
己酸耐受性:经过27轮适应(135代),菌株能在6.24 g/L的己酸胁迫下正常生长 -
工业验证:通过ALE驯化,菌株在22,500升工业发酵罐中实现196 g/L赤藓糖醇
4.3 菌株交配:强强联合
解脂耶氏酵母有MATA和MATB两种交配型。研究者通过两步法交配型转换技术,将一株高效利用木糖的菌株与一株高产代谢物的菌株“联姻”,成功获得了同时具备木糖利用能力和高产α-亚麻酸(0.52 g/L)、核黄素(96.6 mg/L)或三乙酸内酯(2.9 g/L)的二倍体菌株。
4.4 发酵工艺升级
连续发酵:两级连续发酵生产Omega-3,总体生产力提升80%,产物浓度提升40%。
灌流发酵:通过模型指导的连续发酵结合ALE,在1L反应器中47天内达到150 g/L生物量,脂质生产力从0.3–0.5 g/L/h跃升至约1 g/L/h。
AI辅助发酵:人工神经网络软传感器仅需4个在线可测变量(DO、初始葡萄糖浓度、NaOH体积),即可实时预测细胞干重、葡萄糖和脂质产量;机器学习辅助信号肽设计使蛋白分泌效率提升近3倍。
4.5 知识基础设施:解脂耶氏酵母知识库(YLKB)
这是首个专门针对解脂耶氏酵母的综合知识库,整合了来自NCBI、UniProt、KEGG、STRING、STITCH、BRENDA、YEASTRACT+等十余个数据库的数据。通过图数据库和组学分析模块,研究者可以快速探索调控网络、发现新的调控链路——例如,通过YLKB平台分析发现新基因靶点YALI0_A00913g,其中断会上调核孔复合物蛋白编码基因YALI0_C17567g(表达量提升2.37倍),从而促进蛋白质合成、提升脂肪醇产量。
五、挑战与展望
尽管前景光明,解脂耶氏酵母的全面工业化仍面临三大挑战:
副产物问题:在高产目标产物的同时,大量碳流会流向柠檬酸、丙酮酸等副产物,降低产物纯度和得率。
下游处理成本:疏水性产物主要储存在脂滴内,破壁提取和纯化步骤繁琐,可占总生产成本的40%–60%。
GMO监管:基因改造菌株在食品和香精应用中面临法规壁垒,审批周期通常2–5年。
未来的方向同样明确:一方面,利用它天然的疏水性底物利用能力,将其打造为“废油转化器”,实现生物制造与废弃物资源化的闭环;另一方面,通过进一步的人源化糖基化改造和蛋白酶缺陷株优化,使其成为复杂药用蛋白的高效分泌平台。此外,光控、化学诱导等动态调控系统的成熟,将让发酵过程从“开环控制”走向“智能反馈”,进一步逼近理论产率。
结语
从一株“爱吃油的野酵母”到合成生物学界的“明星底盘”,解脂耶氏酵母用十年时间完成了一次华丽转身。它不仅能把废弃食用油变成营养补充剂、把粗甘油变成高价值化学品,还能清理石油污染、合成从角鲨烯到白藜芦醇的数百种高价值分子。
它的故事告诉我们:最好的生物制造平台,不一定是研究最透彻的那个,而是天生具备最匹配代谢特征的那个。当基因编辑工具、AI辅助设计和连续发酵技术三管齐下时,这株“非主流”酵母正在书写生物制造的新范式。
参考文献:
-
Lukito, B.R., Sofeo, N., Lim, H.J., et al. (2026). Expanding biotechnological applications of Yarrowia lipolytica: Key advances in the past decade. Biotechnology Advances, 88, 108835.
-
Dinter, C., Vonester, D., Flitsch, D., et al. (2024). Combined optical measurement of dissolved oxygen tension (DOT), pH value, biomass and viscosity in shake flasks. Biochemical Engineering Journal, 212, 109515.
-
任延虎, 张德勇. (2026). 基于产油脂酵母的高值产物开发研究进展. 中国粮油学报, 41(2), 226-233.
-
孙美莉, 王凯峰, 陆然, 纪晓俊. (2023). 解脂耶氏酵母底盘细胞的工程改造及应用. 合成生物学, 4(4), 779-807.
-
买洁, 余霄, 李文娟, 聂志奎, 纪晓俊. (2022). 解脂耶氏酵母异源合成类胡萝卜素的研究进展. 生物加工过程, 20(5), 546-555.
-
沈玉平, 陈诗洁, 周迅, 张祖姣. (2022). 代谢工程改造解脂耶氏酵母生产油脂研究进展. 中国油脂, 47(10), 103-113.
-
赵禹, 刘士琦, 李建, 等. (2021). 解脂耶氏酵母作为微生物细胞工厂的应用研究进展. 食品科学, 42(19), 388-400.
-
李坤, 牟志勇, 严鑫, 等. (2023). 解脂耶氏酵母产赤藓糖醇研究进展. 食品科学, 44(17), 196-203.
-
赵璇, 刘中雪, 吴玲玲, 等. (2026). 解脂耶氏酵母细胞工厂生产重组蛋白的研究进展. 生物技术进展.(已接收)
-
黄媛媛. (2024). 解脂耶氏酵母知识库的构建研究. 天津科技大学硕士学位论文.
-
张付涛, 陈凯丽, 王东月, 等. (2019). 解脂耶氏酵母产脂肪酶的研究进展. 中国酿造, 38(4), 17-20.
-
Lee, S., Lee, J.H., Park, H.J., Baek, S.-H. (2025). Yarrowia lipolytica as a promising cell factory for microbial production of value-added nutraceuticals. Frontiers in Bioengineering and Biotechnology, 13, 1673169.
推荐阅读
真菌毒素纯度标准样品:玉米赤霉烯酮,呕吐毒素,OTA,T2及其衍生物
“十五五规划”解读–聚焦我国农业微生物种质资源现状和利用发展趋势
Western Blot技术检测蛋白质的标准实验流程与操作规范
农业领域的 “全能选手”-贝莱斯芽孢杆菌(Bacillus velezensis)
Microbial cell agriculture-微生物细胞农业
Biotechnology Advances:基于机器学习的一般步骤
发酵罐无菌系统无菌空气的检测
从OFAT与RSM到机器学习:解锁培养基优化密码系列-机器学习基本概念和机器学习分类
深化农村改革 扎实推进乡村全面振兴一号文件中潜在的微生物和发酵发展机遇
非常高清的代谢图(Core Metabolic Roadmap)
诺奖后的第一个大风波!微生物领域这一“巨大”成果遭Nature疯抢!
2024年诺贝尔奖两项花落人工智能,发酵工业的终点会不会也是AI
中国科学院天津工业生物技术研究所智能生物制造中心发酵分离纯化中试车间
微生物发酵技术在保障国家粮食安全的蛋白替代战略中发挥重要作用